研究背景
线粒体质量控制(MQC)对于维持线粒体稳态和细胞的正常生理功能至关重要。在哺乳动物细胞中,MQC通过:线粒体蛋白的泛素化和蛋白酶体降解、自噬和线粒体衍生囊泡(MDVs)来实现。通过自噬体-溶酶体途径(称为线粒体自噬)选择性降解线粒体可能是清除受损或功能失调线粒体最重要的途径。PINK1-Parkin介导的线粒体自噬,通过清除受损的线粒体,是MQC的关键机制之一。mATG8(mammalian ATG8s)的脂质化(lipidation)是自噬过程的关键步骤,然而其在线粒体自噬过程中的作用仍有待进一步的研究。
研究成果
2022年6月28日,澳门大学/新加坡国立大学沈汉明团队在《Nature Communications》(IF 17.694)杂志上发表题为“A degradative to secretory autophagy switch mediates mitochondria clearance in the absence of the mATG8-conjugation machinery”的文章。研究表明,受损的线粒体通过自噬性分泌排出胞外,作者将此过程命名为Autophagic Secretion of Mitochondria(ASM)。当细胞mATG8偶联机制功能失调时,ASM是MQC中的一种机制,参与炎症反应。
467-022-31213-7
研究过程与结果
1.mATG8偶联系统不是PINK1-PARKIN介导的线粒体清除所必需的
在WT细胞中,A/O(寡霉素)处理使线粒体去极化,并激活PINK1-Parkin通路,导致线粒体蛋白的时间依赖性顺序降解。从mitoGFP中释放游离的GFP片段证实了线粒体进行溶酶体降解。目前已知,OMM(线粒体外膜)蛋白可被脲蛋白酶体系统快速降解,而不依赖于自噬小体-溶酶体途径。作者在WT和ATG7-KO细胞中发现了类似的OMM蛋白降解模式,表明mATG8偶联系统不是PINK1-PARKIN介导的线粒体清除所必需的(图1)
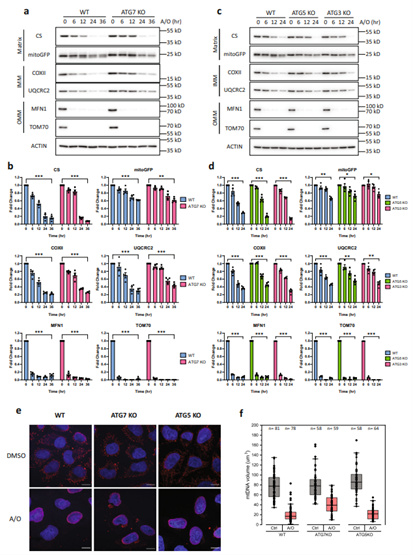
图 1. PINK1-PARKIN介导的线粒体清除并不需要mATG8偶联系统
2. 清除受损线粒体需要mATG8偶联系统上游的关键ATG组件
在A/O处理下,敲除PINK1,阻止了Ub(PINK1靶向泛素)在Ser65位点(一个成熟的PINK1依赖的磷酸化位点)的磷酸化。在用A/O处理的PINK1-KO细胞中,线粒体清除几乎完全被阻断。与WT和ATG7-KO细胞相比,ATG9A-KO细胞中线粒体标志物的降解显著被抑制,细胞中FIP200的敲除显著损害了线粒体蛋白的降解。表明参与mATG8偶联系统上游的自噬小体生物发生的关键ATG组件,仍然是PINK1-Parkin介导的线粒体清除所必需的(图2)。
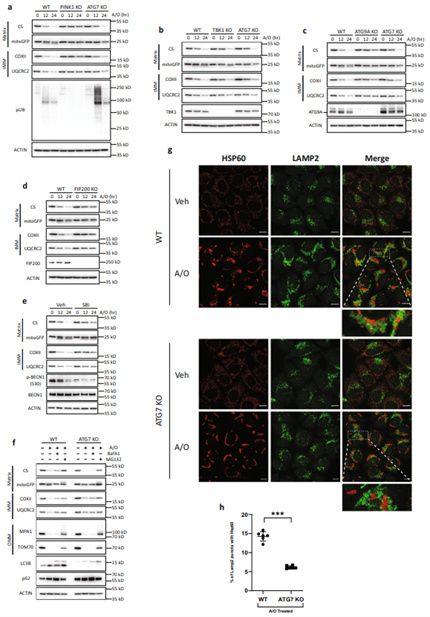
图 2. 清除受损的线粒体需要mATG8偶联系统上游的关键ATG成分
3. 受损线粒体通过与小型EVs(细胞外囊泡)不同途径分泌
实验表明ATG7-KO细胞在线粒体损伤条件下分泌的线粒体和溶酶体含量高于WT细胞(图3)。从A/O处理的ATG5-KO或ATG3-KO细胞中观察到线粒体标志物的增加。ATG7-KO细胞的EV部分在线粒体损伤时含有Ser65p-Ub(线粒体受损标志)、IMM(线粒体内膜)和基质蛋白,表明ATG7-KO细胞线粒体分泌增加。ATG7-mKO小鼠血清EV部分的线粒体标记物水平显著升高。通过实验证实分泌的线粒体和小型EVs是不同的群体(图4)。
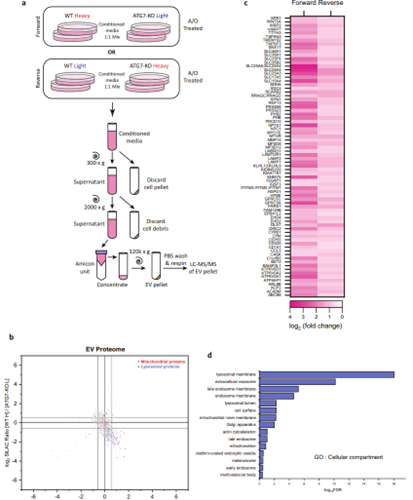
图 3. 细胞外囊泡的全局蛋白质组学分析
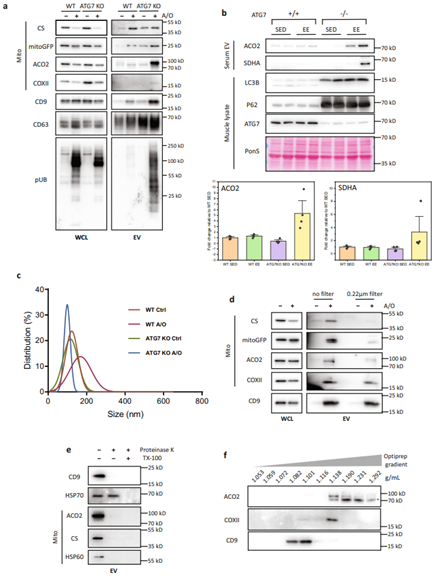
图 4. 受损线粒体通过与小型EVs不同的途径分泌
4. 线粒体分泌通过分泌性自噬发生
研究证明线粒体确实被WT和ATG7-KO细胞中完整的自噬体隔离。在ATG7-KO细胞中敲除ATG9A(已被证明介导自噬体形成)可阻断线粒体分泌。在基础条件下,RAB7A缺失显著增加线粒体标记物的分泌,而线粒体损伤时线粒体分泌不受影响。受损的线粒体可通过分泌自噬途径从细胞中挤出,这一介导mATG8脂化独立于ATG7的过程,称为线粒体自噬分泌(ASM)。
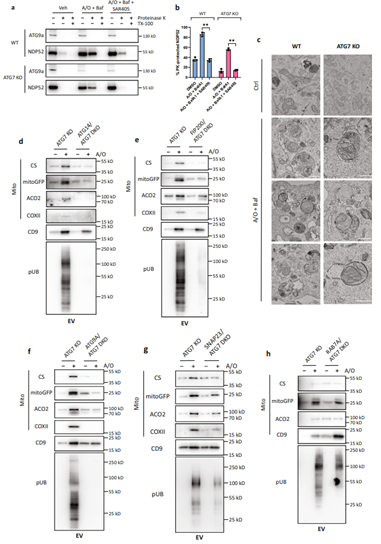
图 5. 线粒体分泌通过分泌性自噬发生
5. 抑制ASM会损害线粒体清除
与ATG7-KO细胞相比,ATG14/ATG14/ATG7-DKO或FIP200/ATG7-DKO细胞中IMM和基质蛋白的降解明显受到抑制。用SBI-0206965抑制ULK1可以抑制经A/O处理的ATG7-KO细胞中的线粒体清除。此外,当ATG7-KO细胞中,ATG9A缺失时,A/O处理后线粒体标志物降解显著被抑制。相反,RAB7A缺失并不影响ATG7-KO细胞EV的线粒体降解。表明当mATG8偶联系统存在缺陷时,ASM作为一个MQC通路存在于清除功能失调的线粒体。(图6)。
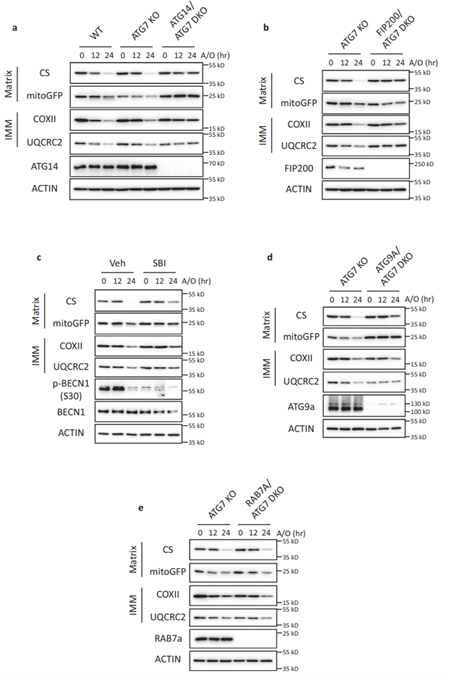
图 6. 线粒体自噬分泌被抑制时,ATG7非依赖性线粒体清除受损
7. 先天免疫cGAS-STING通路被ASM有效激活
添加来自 ATG7KO 细胞的 EV 导致 cGAS-STING通路激活,STING依赖性促炎基因(IL6,IL8,IFNB1,CXCL10,IFIT1)的表达显著升高。与ATG7-KO细胞相比,当与从ATG14 / ATG7-DKO细胞分离的EV一起孵育时,来自受体细胞的STING依赖性基因和IL6分泌的表达显著降低(图7)。证实cGAS-STING通路可被ASM有效激活。
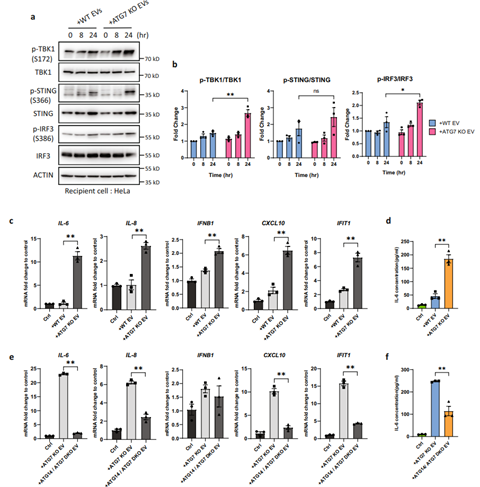
图 7. cGAS-STING通路可被ASM有效激活
总结
作者提出了一个依赖于分泌性自噬的MQC通路,将这一过程称之为ASM(图8)。作者发现在PINK1-Parkin线粒体自噬过程中,如果没有mATG8偶联机制,线粒体可以从细胞中清除,但仍依赖于参与自噬小体生物发生的上游ATG蛋白。且在没有mATG8偶联系统的情况下,线粒体清除被发现归因于其通过分泌性自噬在细胞外的释放。ASM通过激活cGAS-STING通路引起受体细胞的促炎反应。
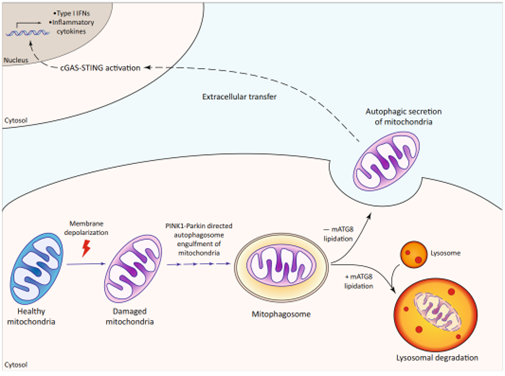
图 8. 线粒体自噬分泌(ASM)的图解摘要
科研实验外包 想了解更多请关注:https://www.do-gene.com/